ХАРАКТЕРИСТИКА ГЕНЕТИЧЕСКОГО ПРОФИЛЯ ЭВЕНСКОЙ ПОРОДЫ ДОМАШНИХ СЕВЕРНЫХ ОЛЕНЕЙ
ХАРАКТЕРИСТИКА ГЕНЕТИЧЕСКОГО ПРОФИЛЯ ЭВЕНСКОЙ ПОРОДЫ ДОМАШНИХ СЕВЕРНЫХ ОЛЕНЕЙ

Аннотация
В статье представлена характеристика популяционно-генетической структуры эвенской породы домашних северных оленей с использованием 16 микросателлитных локусов ДНК. Анализ данных проводили в средах Microsoft Excel (GeneAlex 6.51) и R, генетическая кластеризация проведена в программе STRUCTURE. Исследование выявило высокий уровень генетического разнообразия во всех субпопуляциях (общее число аллелей Na = 165). Установлено, что Усть-Янская субпопуляция обладает наибольшим числом аллелей и высокими показателями гетерозиготности. Показатели Fst (0,006–0,013) свидетельствуют о низком уровне межпопуляционной дифференциации и принадлежности к одной породе с историческим потоком генов. Кластерный анализ определил двух основных генетических групп: одна представлена исключительно оленями из Оймяконского района, вторая имеет смешанный характер (преимущественно животные из Усть-Янского и Томпонского районов), подтверждая их высокое генетическое сходство. Результаты указывают на благоприятное состояние популяции для дальнейшего развития породы.
1. Введение
Эвенская порода домашних северных оленей (Rangifer tarandus) представляет собой один из ключевых биологических и хозяйственных ресурсов Республики Саха (Якутия). Данная порода не только выступает фундаментом традиционного уклада жизни коренных малочисленных народов, но и является основой для продовольственной безопасности и экономического развития арктических и субарктических районов региона. Согласно сводным данным на 2026 год, Республика Саха (Якутия) по общему поголовью домашних оленей (166,7 тыс. гол.) находиться на втором месте после Ямало-Ненецкого АО.
Численность оленей эвенской породы в республике на начало года составила около 60% от всего поголовья домашних северных оленей в регионе. Разведением этой породы занимаются в 14 улусах (районах), включая Абыйский, Булунский, Верхнеколымский и другие, что говорит о высокой адаптивности к различным природно-климатическим условиям — от горно-таежных зон до тундры.
Внутри эвенской породы исследователи выделяют две основные популяции — тундровую и таежную (горно-таежную). Такое разделение было обусловлено историческими путями миграции народов севера и спецификой содержания. В отличие от тундровых, таежная популяция развивалась в условиях пересеченной местности и спецификой содержания этих оленей является выпас на коротких маршрутах и небольшими стадами. Будучи адаптированными к условиям горного рельефа, в летний период их выпас проходит на высокогорьях, а в зимнее время в межгорных понижениях и пойменных комплексах речных долин.
Формирование эвенской породы домашних северных оленей проходило под непосредственным влиянием ее хозяйственного использования. Для коренных народов севера домашний северный олень был не только источником пищи, но прежде всего основным средством передвижения. Отбор по рабочим качествам, по скорости передвижения и способности нести груз на протяжении веков способствовал формированию фенотипа современных эвенских оленей.
Проведенные молекулярно-генетические исследования отдельных хозяйств выявили высокий уровень генетического разнообразия , , , . Однако необходимо отметить, что большинство проведенных ранее исследований охватывало лишь отдельные хозяйства или использовали разную панель маркеров, в результате чего комплексная оценка генетической структуры эвенской породы с охватом ключевых районов разведения и применением современных методов многомерной статистики оставалась невыполненной. Настоящая работа восполняет этот пробел и представляет собой анализ генетического профиля эвенской породы домашних северных оленей на основе 16 микросателлитных локусов с оценкой популяционной дифференциации (Fst) и байесовской кластеризацией по трем районам Якутии.
В исследованиях Харзиновой В.Р. (с соавт., 2017 г.) разработанный для крупного рогатого скота ДНК-чип BovineSNP50 BeadChip, был успешно использован для генетической дифференциации северного оленя. Проведенный в этой работе анализ выявил наличие приватных аллелей, которые подчеркивают уникальность генофонда эвенской породы .
Одним из важных аспектов для разработки эффективных селекционных программ и обеспечения устойчивости животных к изменениям окружающей среды является оценка генетического разнообразия пород сельскохозяйственных животных , , , .
Цель настоящей работы — комплексная оценка генетической структуры эвенской породы домашних северных оленей Республики Саха (Якутия) на основе анализа 16 микросателлитных локусов ДНК с определением уровня внутрипопуляционного разнообразия, степени межпопуляционной дифференциации (Fst) и выявлением основных генетических кластеров с использованием байесовского подхода.
2. Методы и принципы исследования
Объектом исследования послужили домашние северные олени эвенской породы. В работе использовались результаты молекулярно-генетического тестирования, содержащиеся в базе данных «Генетические особенности пород домашних северных оленей Республики Саха (Якутия) по микросателлитным локусам ДНК» (Номер свидетельства: RU 2021620509) .
Из базы были извлечены данные генотипирования 481 животного по 16 микросателлитным локусам: домашние северные олени Оймяконского района — 352 головы, Томпонского района — 51 голова и Усть-Янского района — 78 голов. Перечень локусов: Rt6, BMS1788, Rt30, Rt1, Rt9, C143, Rt7, OheQ, FCB193, C217, Rt24, C32, BMS745, NVHRT16, T40, C276.
Обработка данных произведена с использованием надстройки для Microsoft Excel «GeneAlex 6.51» (США) и в среде программирования R (версия 4.5.3) с использованием интегрированной среды разработки RStudio (США). Генетическую структуру исследуемой выборки анализировали с использованием метода байесовской кластеризации в программе STRUCTURE v2.3.4 (Pritchard et al., 2000). Анализ проводили на основе модели admixture с предполагаемыми предковыми популяциями (K), варьирующими от 1 до 5. Для каждой величины К было выполнено 10 независимых MCMC-прогонов, каждый прогон включал фазу burn-in длительностью 100000 итераций, за которой следовало 500000 аналитических итераций (MCMC steps).
3. Результаты
Анализ популяционно-генетической характеристики (табл. 1.) показал высокий уровень генетического разнообразия во всех трех исследуемых хозяйствах, что говорит об их благополучном состоянии. Суммарно по всем локусам в трех выборках выявлено 165 аллелей (Томпонская — 127, Усть-Янская — 144, Оймяконская — 137).
Таблица 1 - Популяционно-генетическая характеристика
Показатель | Томпонская | Усть-Янская | Оймяконская |
Общее число аллелей (Na) | 7,938 ± 0,793 | 9,000 ± 1,080 | 8,563 ± 0,917 |
Эффективное число (Ne) | 4,295 ± 0,444 | 4,664 ± 0,475 | 4,032 ± 0,453 |
Наблюдаемая гетерозиготность (Ho) | 0,683 ± 0,048 | 0,721 ± 0,039 | 0,698 ± 0,040 |
Ожидаемая гетерозиготность (He) | 0,703 ± 0,047 | 0,728 ± 0,042 | 0,688 ± 0,043 |
Индекс фиксации (FIS) | 0,036 ± 0,030 | 0,001 ± 0,017 | -0,022 ± 0,012 |
Усть-Янская субпопуляция оленей характеризуется наибольшим количеством аллелей (9,000 ± 1,080), что превышает показатели Томпонской (7,938 ± 0,793) и Оймяконской (8,563 ± 0,917) субпопуляций. Кроме того, олени Усть-Янского района имеют высокие показатели гетерозиготности (наблюдаемая — 0,721, ожидаемая — 0,728) Эти показатели позволяют считать этих оленей ценным генетическим резервуаром для всей породы.
Для оценки степени генетических различий между исследованными субпопуляциями был проведен расчет коэффициентов Fst и генетических расстояний по Нею (табл. 2 и 3).
Таблица 2 - Парные значения Fst
Томпонская | Усть-янская | Оймяконская | |
Томпонская | 0,000 | ||
Усть-янская | 0,006 | 0,000 | |
Оймяконская | 0,013 | 0,012 | 0,000 |
Полученные значения Fst (от 0,006 до 0,013) подтверждают то, что все три субпопуляции относятся к одной большой популяции с интенсивным историческим потоком генов.
Генетическое расстояние по Нею
NeiD
| Томпонская | Усть-янская | Оймяконская |
Томпонская | 0,000 | ||
Усть-янская | 0,025 | 0,000 | |
Оймяконская | 0,064 | 0,061 | 0,000 |
Наибольшее генетическое расстояние наблюдается между оленями Оймяконского района и двумя другими (0,064 и 0,061). Между оленями Усть-Янского и Томпонского районов генетическое расстояние составило 0,025, что может указывать на сходство их эволюционной истории и возможного обмена животными.
Кластерный анализ с использованием программы STRUCTURE позволил визуализировать генетические различия (рис. 1).
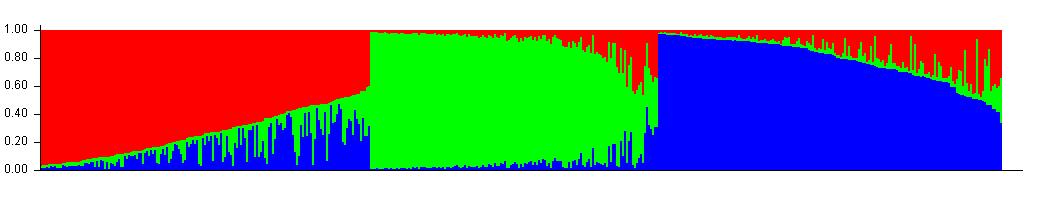
Рисунок 1 - Генетическая кластеризация домашних северных оленей эвенской породы
Результаты кластерного анализа показывают существование двух основных генетических групп. Одна группа представлена исключительно оленями Оймяконского района (образуя два отдельных кластера), что свидетельствует о ее генетической изоляции. Вторая группа имеет смешанный характер и включает преимущественно животных из Усть-Янского (52%) и Томпонского (34%) районов, подтверждая их высокую степень генетического сходства, что также подтверждается данными из таблиц 2 и 3 (NeiD=0.025, Fst-0.006).
Пространственное распределение этих групп наглядно отражено на построенной диаграмме (цветовая маркировка: красный — «Усть-Янская», зеленый — «Томпонская», синий – «Оймяконская) (рис. 2.).
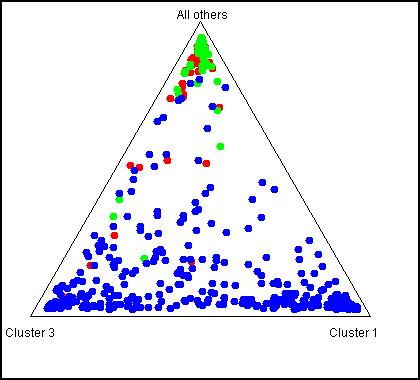
Рисунок 2 - Треугольная диаграмма, показывающая распределение эвенской породы по генетическим кластерам
Высокий уровень генетического разнообразия (Na≈8.5, Ho≈0.7), отсутствие существенного инбридинга (Fis≈0) является благоприятным фактором для дальнейшего развития породы. Низкие значения Fst подтверждают о принадлежности к одной породе. Однако наличие приватных аллелей и результаты кластерного анализа указывают на то, что каждая субпопуляция имеет свои особенности.
4. Заключение
Проведенный анализ показал наличие высокого уровня генетического разнообразия во всех исследованных субпопуляциях (число аллелей — от 7,94 до 9,00, наблюдаемая гетерозиготность — от 0,683 до 0,721), что свидетельствует о сохранности генофонда и отсутствии негативных последствий инбридинга (индекс фиксации FIS близок к нулю: от –0,022 до 0,036).
Низкие значения парных коэффициентов Fst (0,006–0,013) подтверждают принадлежность всех трех выборок к единой породе с активным историческим потоком генов. В то же время кластерный анализ методом STRUCTURE выявил наличие двух основных генетических групп: одна из них представлена исключительно оленями Оймяконского района (два отдельных кластера), что указывает на их относительную генетическую обособленность; вторая группа носит смешанный характер и объединяет преимущественно животных из Усть-Янского (52%) и Томпонского (34%) районов, что согласуется с минимальными генетическими расстояниями между этими субпопуляциями (NeiD = 0,025). Таким образом, внутри эвенской породы прослеживается пространственная генетическая структура, обусловленная, вероятно, историческими особенностями и системами содержания.
Полученные данные создают основу для мониторинга генетического состояния субпопуляций, выявления потенциальных резервных групп и разработки рекомендаций по сохранению внутрипородного разнообразия при планировании селекционных мероприятий.