АНТИФАГОВЫЙ ИММУНИТЕТ МЕДЛЕННОРАСТУЩИХ КЛУБЕНЬКОВЫХ БАКТЕРИЙ РОДА BRADYRHIZOBIUM: БИОИНФОРМАТИЧЕСКИЙ АНАЛИЗ И ХАРАКТЕРИСТИКА
АНТИФАГОВЫЙ ИММУНИТЕТ МЕДЛЕННОРАСТУЩИХ КЛУБЕНЬКОВЫХ БАКТЕРИЙ РОДА BRADYRHIZOBIUM: БИОИНФОРМАТИЧЕСКИЙ АНАЛИЗ И ХАРАКТЕРИСТИКА

Аннотация
Клубеньковые бактерии рода Bradyrhizobium — важнейшие симбионты бобовых растений, обеспечивающие биологическую фиксацию азота. Получение фагоустойчивых штаммов — один из путей повышения эффективности применения микробиологических препаратов. В настоящей работе проведён биоинформатический анализ распространённости и структурного разнообразия систем антифаговой защиты в 14 полных геномах штаммов представителей разных видов рода Bradyrhizobium. Идентифицировано 77 систем антифаговой защиты, которые были отнесены к пяти типам по механизмам действия. Установлено, что 61% систем имеют неизвестный механизм защиты, что открывает перспективы для открытия новых иммунных путей. Выявлены уникальные для рода Bradyrhizobium системы абортивной инфекции (Gasdermin, Hachiman_other, PARIS, ретроны XIII подтипа, SEFIR) и системы с неизвестным механизмом (Shango и 6 PDC). Показаны существенные различия между бактериями рода Bradyrhizobium и быстрорастущими бактериями рода Sinorhizobium по разнообразию подтипов систем врождённого иммунитета, а также сигнальных и абортивных систем. Полученные результаты создают основу для конструирования фагоустойчивых штаммов-инокулянтов и расширяют представления об эволюции антифагового иммунитета у медленнорастущих клубеньковых азотфиксирующих бактерий.
1. Введение
Клубеньковые бактерии (ризобии) представляют собой агрономически значимую группу почвенных микроорганизмов, объединённых способностью вступать в симбиотические взаимоотношения с растениями семейства Бобовые (Fabaceae). В ходе этого взаимодействия ризобии индуцируют формирование корневых клубеньков, внутри которых осуществляется процесс биологической фиксации атмосферного азота с его последующей трансформацией в аммонийные формы, доступные для растений-хозяев . Ризобии, образующие клубеньки на бобовых растениях относятся к четырем разным семействам, в числе которых Nitrobacteraceae (ранее Bradyrhizobiaceae) и Rhizobiaceae, включающие роды Bradyrhizobium и Sinorhizobium, соответственно. Представители этих родов, формирующие симбиоз с зернобобовыми и кормовыми бобовыми травами, контрастно различаются по жизненным формам — от свободноживущих сапрофитов до эндофитов, облигатных симбионтов и фитопатогенов, а также по микробиологическим и геномным характеристикам .
В почвенной среде ризобии постоянно подвергаются инфицированию бактериофагами, что создаёт селективное давление, направленное на выживание бактериальных популяций. Ответом на это давление стало формирование разнообразных молекулярных механизмов антифаговой защиты, подразделяемых на системы врождённого и адаптивного иммунитета . К числу последних относятся CRISPR-Cas-системы, обеспечивающие защиту от повторного инфицирования гомологичными фагами. Среди систем врождённого иммунитета наиболее изучены системы рестрикции-модификации (RM-системы), обеспечивающие быстрый, но неспецифичный ответ на фаговую инфекцию. Важную роль играют токсин-антитоксиновые модули и системы абортивной инфекции (Abi), основанные на программируемой гибели инфицированной клетки, что предотвращает репликацию фага и распространение вирусных частиц в популяции. Кроме того, у бактерий выявлены механизмы химической защиты, включающие продукцию экзополисахаридов и низкомолекулярных ингибиторов, блокирующих прикрепление и проникновение фага, а также сигнальные системы, модулирующие физиологическое состояние клеток в ответ на стресс . В ходе сравнительной геномики у многих бактерий, включая ризобий, идентифицированы антифаговые системы с неизвестным механизмом действия — системы, функция которых требует экспериментальных подтверждений . Несмотря на то, что спектр перечисленных антифаговых иммунных систем наиболее детально охарактеризован для патогенных и модельных грамотрицательных бактерий (Escherichia coli, Pseudomonas aeruginosa, Salmonella spp.), сведения об их распространённости, структурной организации и функциональной активности у симбиотических почвенных бактерий остаются фрагментарными и крайне ограниченными. Изучение взаимодействий в системе «бактерия–бактериофаг» в условиях ризосферы имеет не только фундаментальный интерес для понимания коэволюции систем «защиты-нападения», но и имеет выраженное прикладное значение, поскольку фаговая инфекция является одной из ключевых причин снижения численности и эффективности штаммов-инокулянтов в составе биопрепаратов, что напрямую сказывается на продуктивности сельскохозяйственных культур.
Особый интерес для изучения антифагового потенциала представляет род Bradyrhizobium — наиболее крупная и филогенетически разнообразная группа азотфиксирующих симбионтов. Типовым представителем является Bradyrhizobium diazoefficiens USDA 110 (ранее B. japonicum USDA 110) — классический симбионт сои (Glycine max), характеризующийся одной из наиболее крупных бактериальных хромосом (около 9,1 млн п.н.) с высоким содержанием ГЦ-пар (≈64%) и значительной долей уникальных генов (до 23%), что отличает его от геномов представителей родов Rhizobium и Sinorhizobium . Эти геномные особенности предполагают наличие у брадиризобий широкого спектра систем врождённого иммунитета, однако системный анализ распространённости соответствующих генетических детерминант не проводился.
Цель работы — получение данных о распространенности и разнообразии систем антифаговой защиты у бактерий рода Bradyrhizobium с использованием биоинформатических подходов. С этой целью был проведён поиск гомологов антифаговых систем, различающихся по механизмам действия, в полногеномных последовательностях штаммов рода Bradyrhizobium, депонированных в международных базах данных. Практическая значимость исследований заключается в формировании базы данных о целевых генах-мишенях, которые могут быть использованы в дальнейшем при конструировании фагоустойчивых штаммов Bradyrhizobium методами генетической инженерии и/или направленной селекции.
2. Методы и принципы исследования
2.1. Объекты исследования
Для биоинформационного анализа были отобраны полногеномные последовательности 117 штаммов клубеньковых бактерий, в числе которых 14 штаммов разных видов рода Bradyrhizobium (семейство Nitrobacteraceae) и 103 штамма бактерий семейства Rhizobiaceae (из них 61 штамм рода Sinorhizobium). Выборка штаммов рода Bradyrhizobium включала как типовые штаммы, так и природные изоляты, выделенные из разных экологических ниш. Полные геномные последовательности исследуемых штаммов были получены из международных баз данных NCBI GenBank и RefSeq (см. табл. 1).
Таблица 1 - Характеристика штаммов рода Bradyrhizobium, использованных в работе
Вид | Штамм | Растение-хозяин | Номер в NCBI |
B. arachidis | CCBAU 051107 | Arachis hypogaea, Lablab purpureus | GCF_015291705.1 |
B. betae | PL7HG1 | Beta vulgaris и Oryza sativa (эндофит) | GCF_008932115.1 |
B. canariense | GAS369 | Lupinus spp., Ornithopus spp., Leucaena spp. | GCF_900105125.1 |
B. commune | BDV5040 | Bossiaea ensata | GCF_015624505.1 |
B. daqingense | CCBAU 15774 | Glycine max и Vigna spp. | GCF_021044685.1 |
B. diazoefficiens | USDA 110 | Glycine max и Sophora spp. | GCF_001642675.1 |
B. guangdongense | CCBAU 51649 | Arachis hypogaea, Lablab purpureus, Aeschynomene spp. | GCF_004114975.1 |
B. guangxiense | CCBAU 53363 | Arachis hypogaea, Lablab purpureus, Aeschynomene spp. | GCF_004114915.1 |
B. icense | LMTR 13 | Phaseolus lunatus | GCF_001693385.1 |
B. japonicum | USDA 6 | Glycine max | GCF_000284375.1 |
B. oligotrophicum | S58 | Aeschynomene spp. | GCF_000344805.1 |
B. paxllaeri | LMTR 21 | Phaseolus lunatus | GCF_001693515.2 |
B. zhanjiangense | CCBAU 51778 | Arachis hypogaea, Lablab purpureus, Vigna radiata | GCF_004114935.1 |
B. sp. | ORS 278 | Aeschynomene spp. | GCF_000026145.1 |
Всего: | | | 14 штаммов |
2.2. Методы исследования
Поиск и анализ наличия генов систем антифаговой защиты клетки, в том числе в полных последовательностях геномов штаммов клубеньковых бактерий проводили с использованием веб-сервера Padloc 2.0.0. .
2.3. Статистическая обработка
Графическое и табличное представление данных осуществляли с использованием пакета программ MS Excel 2010. Статистическую обработку данных проводили с применением критерия χ2, полученные значения считали достоверными при P<0,05, а также критерий Стьюдента (t) (программа Past ver. 4.03).
3. Основные результаты
При анализе геномов всех 117 штаммов была выявлена 161 система антифаговой защиты, которые кодируют 414 элементов данных систем. В полногеномных последовательностях 14 штаммов разных видов рода Bradyrhizobium выявлено 77 из 161 системы, тогда как в геномах бактерий семейства Rhizobiaceae аналогичных элементов было почти в два раза больше (149). На основании предполагаемого механизма действия 161 система была распределена по пяти функциональным категориям: химическая защита (тип A), сигнальные системы (тип B), системы врождённого иммунитета (тип C), системы абортивной инфекции (тип D), а также системы с неизвестным механизмом защиты (тип X) (см. рис. 1). Полученные выборки достоверно не различались (χ2 = 0,83333; p = 0,65924).
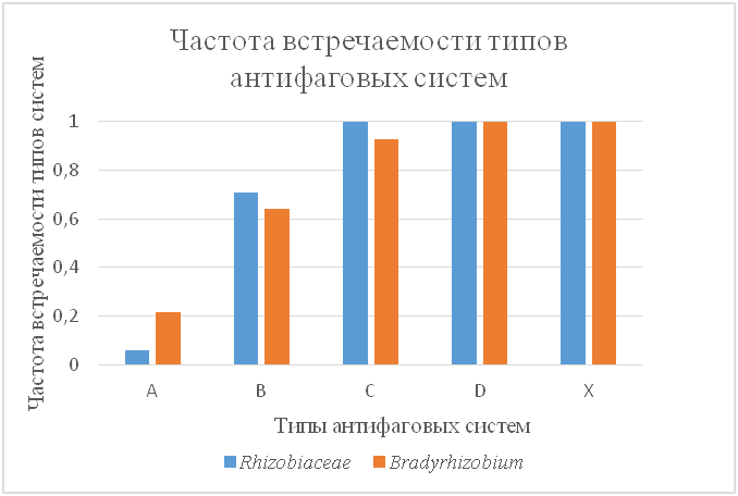
Частота встречаемости типов антифаговых систем защиты в геномах бактерий рода Bradyrhizobium и семейства Rhizobiaceae
различия между выборками не достоверны при χ2 = 0,83333; p = 0,65924
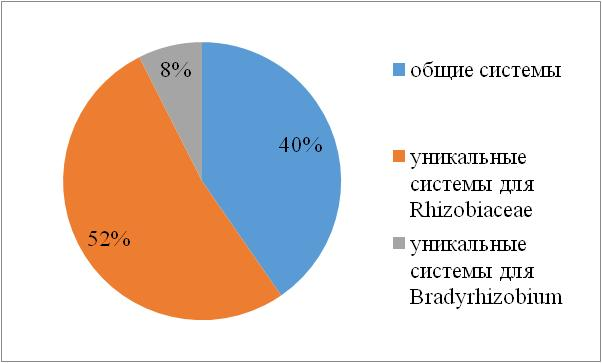
Доли антифаговых систем защиты (общие и уникальные) бактерий рода Bradyrhizobium и семейства Rhizobiaceae
распределение элементов общих антифаговых систем у Bradyrhizobium и Sinorhizobium достоверно не различалось, согласно рассчитанному критерию Стьюдента, P>0,05
Наиболее представительной была группа систем типа-X, которая включала 40 подсистем, являвшихся общими с бактериями семейства Rhizobiaceae. Показано, что 25 систем могут рассматриваться как системы-кандидаты (PDC — putative defense candidates). Среди этих систем наиболее часто встречавшимися были: PDC-S07 и PDC-S40 (1,0), а также PDC-S02 (0,286), PDC-S16 (0,286), PDC-S37 (0,286) и PDC-S51 (0,214). Выявлены системы уникальные для бактерий рода Bradyrhizobium: шесть PDC (PDC-M05, PDC-M11, PDC-M50, PDC-S09, PDC-S14, PDC-S71) и система Shango (0,214), которая недавно охарактеризована как система, связанная с токсическими эффектами, влияющими на целостность генома фага и блокирующая его репликацию в клетке хозяина и Функциональная роль систем типа-X требует экспериментальных подтверждений, но уже сейчас эти системы являются кандидатами для изучения новых механизмов антифаговой защиты.
Проведен сравнительный анализ системы антифаговой защиты SoFic (абортивная инфекция) между родами Bradyrhizobium и Sinorhizobium. Данная система кодируется одним белком, участвующим в переносе АМФ на целевые белки, что приводит к нарушению их функций и последующей гибели клетки . Анализ нуклеотидных последовательностей гена fic выявил существенные различия между штаммами рода Bradyrhizobium и Sinorhizobium как по частоте встречаемости, так и по структурной организации и геномной локализации. Частота встречаемости гена fic в геномах Sinorhizobium составила 0,85, тогда как у Bradyrhizobium этот показатель был значительно ниже (0,59). Число последовательностей у представителей Bradyrhizobium варьировало от 1 до 3-х на геном и локализованы они были преимущественно на хромосоме (0,7). Размер последовательностей гена fic составил от 806 до 1404 п.н. Подавляющее большинство штаммов рода Sinorhizobium имело две копии гена fic, которые были локализованы только на плазмидах. Выявленные последовательности также существенно различались по размеру (360 — 1173 п.н.). Степень сходства выявленных последовательностей с референсом варьировала от 79 до 91% при покрытии от 4 до 100 %. Установлено, что последовательности, выявленные у штаммов родов Bradyrhizobium и Sinorhizobium, либо не имели сходства, либо это были крайне низкие значения (покрытие 3–6%).
Таким образом, проведённый сравнительный анализ позволил выявить характерные особенности набора антифаговых систем у бактерий рода Bradyrhizobium, отличающие его от представителей рода Sinorhizobium. Для Bradyrhizobium установлено наличие уникальных систем неизвестного механизма действия и систем абортивной инфекции (Gasdermin, Hachiman_other, PARIS, ретроны XIII подтипа, SEFIR). Вместе с тем анализ одной из общих систем — SoFic, выявил существенные различия между бактериями удаленных таксонов по их локализации в геноме: у бактерий рода Bradyrhizobium — преимущественная локализация SoFic на хромосоме, тогда как у бактерий рода Sinorhizobium — на плазмидах. Кроме того, сходство нуклеотидных последовательностей гена fic у представителей указанных родов фактически отсутствовало. Это может свидетельствовать о нескольких эволюционных сценариях. Во-первых, ген fic мог быть приобретён брадиризобиями в ходе древнего горизонтального переноса с последующей длительной адаптивной эволюцией, приведшей к значительной дивергенции . Во-вторых, не исключено, что у бактерий рода Bradyrhizobium функцию абортивной инфекции выполняют белки, гомологичные SoFic лишь по структуре активного центра, но существенно различающиеся по первичной последовательности, что показано, например, для многих систем токсин-антитоксин . Наконец, хромосомная локализация гена у Bradyrhizobium в отличие от плазмидной у Sinorhizobium может указывать на более стабильное закрепление данной системы в геноме медленнорастущих бактерий, тогда как у быстрорастущих ризобий горизонтальный перенос обеспечивает более быструю адаптацию к меняющемуся фаговому прессу.
4. Обсуждение
Полученные результаты показали, что бактерии рода Sinorhizobium характеризуются значительно более разнообразным и многочисленным составом антифаговых систем, в числе которых существенно преобладали системы абортивной инфекции (тип D), а у бактерий рода Bradyrhizobium — таковыми являлись системы рестрикции-модификации (тип C), и также системы типа D. Совокупность выявленных различий свидетельствует о существенной дивергенции арсеналов антифаговых иммунных систем защиты между филогенетически удалёнными группами клубеньковых бактерий, что, вероятно, отражает адаптацию их различным экологическим нишам и условиям фагового пресса.
Учитывая высокую долю систем с неизвестным механизмом у Bradyrhizobium, можно предположить, что этот род является перспективной моделью для открытия ранее неизвестных путей иммунитета, что согласуется с недавними исследованиями, указывающими на богатство систем иммунных систем не известного назначения у почвенных бактерий .
Полученные данные имеют прямое прикладное значение для повышения эффективности биопрепаратов на основе клубеньковых бактерий. Понимание того, какие антифаговые системы являются наиболее распространёнными и консервативными позволяет разрабатывать стратегии скрининга штаммов на наличие этих систем при отборе кандидатов в качестве штаммов-инокулянтов. С другой стороны, знание уникальных систем Bradyrhizobium может быть использовано для целенаправленного конструирования штаммов с модулируемой фагоустойчивостью. Учитывая высокую значимость брадиризобий для симбиоза с соей — одной из важнейших сельскохозяйственных культур мирового значения , — разработка фагоустойчивых штаммов Bradyrhizobium является стратегической задачей биотехнологии микробных удобрений.
5. Заключение
Таким образом, проведённое исследование впервые дало системное представление об оснащённости медленнорастущих бактерий рода Bradyrhizobium системами антифаговой защиты и позволило провести их сравнение с быстрорастущими представителями семейства Rhizobiaceae. Выявлены уникальные спектры антифаговых систем брадиризобий, особенно в отношении систем абортивной инфекции и систем с неизвестным механизмом. Полученные результаты указывают на то, что штаммы разных родов имеют различные подходы для защиты от фагов и открывают новые направления для фундаментальных исследований эволюции иммунных систем у симбиотических бактерий и создают основу для биотехнологических разработок в области фагоустойчивых инокулянтов.